Pudrición gris en arándano: el rechazo en destino se decide en la flor
El contenedor sale limpio del packing y llega con moho. No es mala suerte ni mala cadena de frío: es una infección que entró semanas antes, cuando el campo estaba en flor.
Publicado el 1 de octubre de 2026
La escena se repite cada campaña. La fruta pasa la selección, el packing la despacha firme y con buena pruina, y tres semanas después el importador manda fotos: bayas blandas, arrugadas, con un moho gris algodonoso que saltó de una a otra dentro del clamshell. El reclamo llega con el descuento, y a veces con el rechazo del lote.
El responsable tiene nombre y está documentado en la costa peruana. Un trabajo sobre aislamientos de La Libertad, Lima, Ica y Áncash los identificó a todos con marcadores moleculares como Botrytis cinerea en sentido estricto, y recoge que el moho gris puede llevarse hasta el 30 % de la fruta en poscosecha (Alberca et al., 2025). No es un patógeno exótico: está en todos los valles arandaneros del país.
Por qué el daño se ve en destino y no en el campo
El arándano peruano viaja lejos. La fruta que sale de Sudamérica necesita más de 15 días de transporte a 0 °C para llegar a los mercados internacionales (Rivera et al., 2013), y ese tiempo es exactamente lo que el hongo necesita. Botrytis sigue avanzando en frío: una infección que en el campo no se veía tiene semanas de viaje para crecer, esporular y contagiar a la fruta vecina.
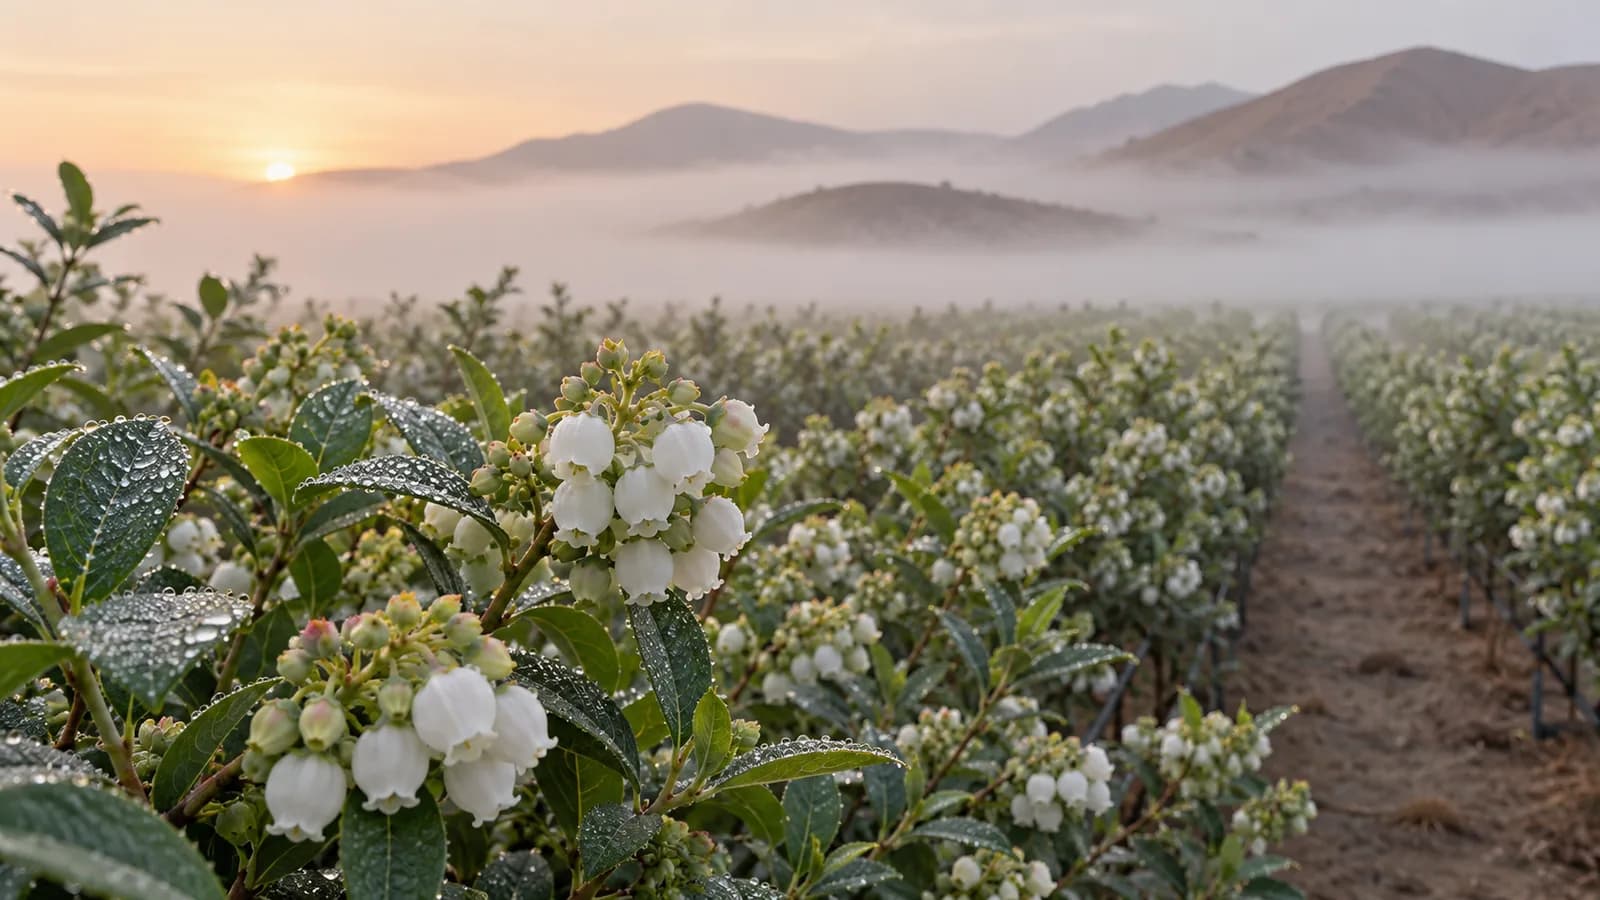
La pregunta útil, entonces, no es qué pasó en el contenedor sino cuándo entró el hongo. El trabajo de Rivera et al. (2013) en Chile lo midió: demostró que Botrytis coloniza flores y frutos de arándano, y que la plena floración y la fruta madura son las dos etapas más susceptibles. La flor abierta, y luego el pétalo seco que queda pegado al cáliz, son tejido blando y en descomposición: el lugar ideal para que el hongo se instale y espere.
Esa espera tiene nombre técnico: infección quiescente. La revisión de Romanazzi et al. (2016) sobre manejo integrado lo resume así: parte de las infecciones que ocurren en campo se quedan quietas durante la temporada y se desarrollan recién después de la cosecha, incluso a 0 °C. El moho que ve el importador es la cuenta de una flor que se infectó semanas atrás.
La costa peruana le pone las condiciones
Botrytis no necesita lluvia: necesita horas de hoja mojada. El mismo estudio chileno armó un modelo de riesgo con una regla simple —más de 6 horas de humedad sobre el tejido con temperaturas entre 14 y 25 °C— y encontró una correlación de 0,96 entre ese riesgo y la incidencia de moho gris en la fruta almacenada (Rivera et al., 2013). Es decir: las noches húmedas de la floración predicen casi por completo lo que va a pasar en la cámara.
En la costa central y norte esas condiciones no son la excepción. Neblina, garúa, humedad relativa alta y temperaturas moderadas son el cuadro normal del otoño y el invierno, una temporada que en muchos fundos coincide con la floración o con la cosecha (Martínez Silva, 2017). La presión no la decide un año malo: la decide el calendario.
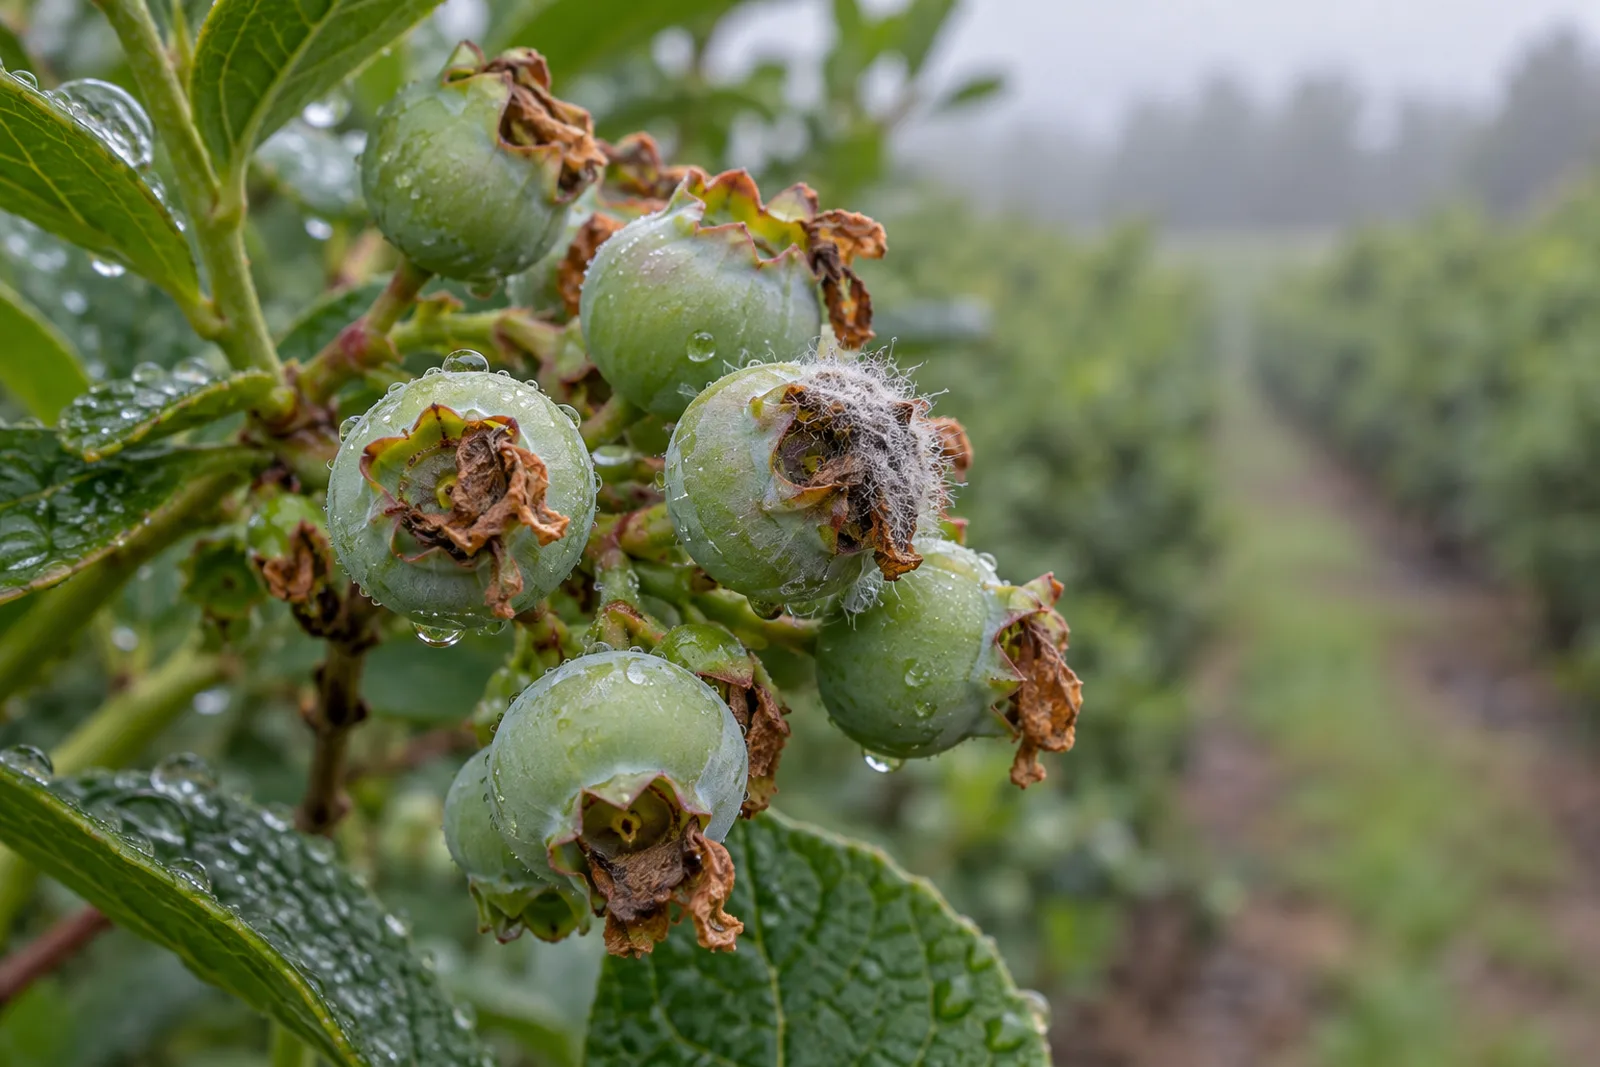
El fungicida que dejó de controlar
La respuesta de siempre ha sido química, y Botrytis aprende rápido a esquivarla. Buena parte de esos fungicidas ataca un solo sitio de la fisiología del patógeno, y basta una mutación en ese sitio para que la molécula deje de encajar (Martínez Silva, 2017). La costa peruana ya tiene esa medición.
En la irrigación Chavimochic, una tesis de la Universidad Nacional Agraria La Molina evaluó 300 aislamientos de Botrytis cinerea de tres campos de arándano frente a siete ingredientes activos. Los porcentajes de resistencia fueron de 96,3 % a azoxystrobin, 79,3 % a cyprodinil y 78,7 % a boscalid (Salazar Cotera, 2024). Es el primer estudio de resistencia en poblaciones de este hongo en el país. Y hay un dato que vale la pena subrayar: todos los aislamientos del campo orgánico fueron sensibles a fludioxonil, fenhexamid y pyrimethanil (Salazar Cotera, 2024). Donde la presión química fue menor, la población conservó su sensibilidad.
El problema tiene una segunda capa. Mientras más cerca está la cosecha, menos herramientas químicas quedan disponibles: cada aplicación deja un residuo, cada residuo tiene un límite máximo en el mercado de destino y un periodo de carencia que respetar (Martínez Silva, 2017). Los compradores de Estados Unidos y Europa piden fruta de calidad y con el menor residuo posible, así que el agricultor llega a la etapa más susceptible —la fruta madura— con el botiquín recortado y contra un hongo que ya resiste buena parte de lo que queda.
Contra Botrytis, el agricultor llega a la cosecha con menos moléculas permitidas y un hongo que ya resiste muchas de ellas. Por eso la pelea se gana antes, en la flor.
Dónde entra el Trichoderma
Un Trichoderma no ataca a Botrytis en un solo sitio, y esa es justamente su ventaja. La revisión de Vos et al. (2015) ordena su caja de herramientas: micoparasitismo —se enrolla en la hifa del patógeno y la degrada—, producción de enzimas y compuestos antifúngicos, competencia por nutrientes y espacio, y además la inducción de resistencia sistémica en la planta, que se activa incluso cuando el Trichoderma no está en contacto con el patógeno. A un patógeno le cuesta mucho más esquivar cuatro mecanismos a la vez que una sola molécula.
La competencia por espacio es la que más importa en la flor. El pétalo que se seca es comida para el primero que llega; si ese tejido ya está ocupado por un hongo benéfico, Botrytis encuentra el sitio tomado. Investigadores peruanos de la Universidad Nacional de Cañete y de la Universidad Nacional Toribio Rodríguez de Mendoza lo pusieron a prueba con 19 cepas nativas de Trichoderma sobre flores y frutos de arándano: todas colonizaron por completo al patógeno, inhibieron su micelio hasta en 42,74 %, y la aplicación de esporas redujo la incidencia y la severidad del moho gris en flor y en fruto (Arestegui Cantoral et al., 2024).
- La protección es preventiva: el biológico tiene que estar sobre la flor y el cáliz antes de que lleguen las noches de neblina, no después de ver el moho.
- La frecuencia acompaña al tejido nuevo: cada flor que abre y cada pétalo que cae es superficie sin ocupar.
- No compite con la cosecha: un Trichoderma no deja residuo químico en la fruta y se puede sostener hasta las últimas pasadas, cuando el químico ya no entra.
- Suma, no reemplaza: el biológico trabaja junto con la poda que airea la planta, el retiro de fruta caída y una cadena de frío sin cortes.
Cómo se arma en el fundo
TRIBERRY combina Trichoderma citrinoviride y T. longibrachiatum, cada una a 1,0 x 10¹⁰ conidias viables por mL. Citrinoviride se establece rápido sobre tejido expuesto; longibrachiatum aporta sus enzimas líticas. Contra el moho gris va en foliar a 2 L/ha cada 15 días desde el cuaje, cuando el pétalo seco queda sobre la baya recién formada, y entra sin carencia, compatible con las ventanas de cosecha. La misma botella protege la raíz por fertirriego y la herida de poda, así que el programa del arándano se arma con un solo producto.
El dato que ordena todo es el del principio: el contenedor que llega con moho se perdió en la flor. El fundo que trabaja esa ventana con biología llega a la cosecha con menos inóculo sobre la fruta y con margen químico para cuando de verdad lo necesite.
El programa para pudrición gris en arándano
TRIBERRY ocupa la flor y el cáliz antes que Botrytis, sin residuo en la fruta y sin carencia, y con la misma botella protege raíz y herida de poda.
O mira el portafolio completo del cultivo
Referencias
- Alberca, O., Ureta, C., Ciprian, G., Casas, A., Apaza, W., Aragón, L. y Huarhua, M. (2025). Molecular identification of subpopulation Botrytis cinerea and susceptibility to fungicides isolates from blueberry (Vaccinium corymbosum) in Peru. Acta Horticulturae, 1440, 325–332. https://doi.org/10.17660/ActaHortic.2025.1440.45
- Arestegui Cantoral, Y. C., Gaslac Zumaeta, E. y Leon Ttacca, B. (2024). Cepas nativas de Trichoderma para el control del moho gris (Botrytis cinerea Pers.) en frutos y flores de arándano (Vaccinium corymbosum L.). Tropical and Subtropical Agroecosystems, 27(3). https://doi.org/10.56369/tsaes.5072
- Martínez Silva, P. P. (2017, 25 de julio). Manejo racional de la pudrición gris (Botrytis cinerea) en el cultivo del arándano en el Perú. Redagrícola Perú. https://redagricola.com/manejo-racional-la-pudricion-gris-botrytis-cinerea-cultivo-del-arandano-peru/
- Rivera, S. A., Zoffoli, J. P. y Latorre, B. A. (2013). Infection risk and critical period for the postharvest control of gray mold (Botrytis cinerea) on blueberry in Chile. Plant Disease, 97(8), 1069–1074. https://doi.org/10.1094/PDIS-12-12-1112-RE
- Romanazzi, G., Smilanick, J. L., Feliziani, E. y Droby, S. (2016). Integrated management of postharvest gray mold on fruit crops. Postharvest Biology and Technology, 113, 69–76. https://doi.org/10.1016/j.postharvbio.2015.11.003
- Salazar Cotera, J. S. (2024). Perfil de resistencia de Botrytis cinerea a diferentes fungicidas durante una campaña de arándano (Vaccinium corymbosum) [Tesis de licenciatura, Universidad Nacional Agraria La Molina]. Repositorio UNALM. https://hdl.handle.net/20.500.12996/6474
- Vos, C. M. F., De Cremer, K., Cammue, B. P. A. y De Coninck, B. (2015). The toolbox of Trichoderma spp. in the biocontrol of Botrytis cinerea disease. Molecular Plant Pathology, 16(4), 400–412. https://doi.org/10.1111/mpp.12189
SIN PERIODO DE CARENCIA, SIN LÍMITE DE RESIDUO
Las etiquetas de la línea VISE declaran periodo de carencia y límite máximo de residuos como «no aplica», y que el producto no es tóxico para el ser humano, animales ni abejas. El reingreso al área tratada es posible una vez seco el depósito de la aplicación.